
 EN

Книга Р. Р. Ахмерова «Регенеративная медицина на основе применения плазмы аутологичной крови. Технология Plasmolifting». Часть 4 — Патогенетические механизмы действия плазмы аутологичной крови
Продолжаем публикацию книги Р. Р. Ахмерова с разрешения автора. В четвёртой части представлена глава 3, посвящённая патогенетическим механизмам действия плазмы аутологичной крови.
Источник: Ахмеров Р. Р. Регенеративная медицина на основе применения плазмы аутологичной крови. Технология Plasmolifting. 2-е изд., испр. и доп. Москва: Литтерра, 2020. С. 34–46.
Раздел I. История и теория
Глава 3. Патогенетические механизмы действия плазмы аутологичной крови
В этой главе я бы хотел более подробно остановиться на патогенетических механизмах действия аутологичной плазмы. Биологический аспект метода Plasmolifting указывает на схожесть патологического механизма с образованием артериального «белого» тромба. И в том и в другом случае морфологическим субстратом являются тромбоциты и лейкоциты. Однако метод Plasmolifting подразумевает минимальное присутствие лейкоцитов, особенно нейтрофилов. Приведенные ниже сведения, с нашей точки зрения, помогут понять более глубинный механизм действия аутологичной плазмы на ткани. Сегодня применение аутологичной плазмы широко распространено в самых различных областях медицины. Чаще всего ее используют как средство борьбы с патологиями, характеризующимися наличием длительного воспаления, хроническое течение которого перемежается со вспышками обострения: к таким состояниям относятся, например, угревая сыпь, хронический генерализованный или локализованный пародонтит, гингивит, периимплантит, эндоцервицит и т.п. То есть речь идет о тканях экто- и эндодермального происхождения (эпидермальные и соединительные ткани) с застойными явлениями воспаления, характеризующихся формированием диффузной или очаговой мононуклеарной инфильтрации. Поскольку в таких тканях резервные силы ограничены, а местные механизмы иммунитета нарушены, в очаге воспаления происходит не эффективная клеточная пролиферация, завершающаяся репарацией тканей, а вторичное повреждение (альтерация) тканей, индуцированное клетками самого очага хронического воспаления. Таким образом создается порочный круг.
3.1. Первая стадия: реакция сосудистой стенки
Воспаленные ткани обычно характеризуются поврежденным эндотелием, что, в свою очередь, становится причиной нарушения кровообращения. Реакция поврежденной сосудистой стенки выражается в вазоконстрикции, возникновение которой в крупных сосудах связано с нервно-рефлекторным механизмом, а в капиллярах — с сокращением миофибрилл эндотелиальных клеток. Сокращение сосудистой стенки может стимулироваться вазоактивными субстанциями, высвобождающимися из адгезированных к месту повреждения тромбоцитов: серотонином, адреналином и тромбоксаном А2. В свою очередь, брадикинин, активирующий фактор XII, может способствовать усилению проницаемости капилляра и сдавлению его извне вышедшей жидкостью.
В реакциях поврежденной сосудистой стенки немаловажную роль играет также сам эндотелий, способный продуцировать как антитромбогенные, так и тромбогенные факторы.
3.2. Вторая стадия: адгезия тромбоцитов
Адгезия (прилипание) тромбоцитов к волокнам коллагена разрушенной сосудистой стенки происходит в первые секунды, следующие за повреждением. Этот процесс обусловлен прежде всего физиологическими механизмами реакции тромбоцитов на травму за счет рецепторов, выполняющих роль посредника между тромбоцитом и различными факторами внешней среды. Большинство рецепторов, фиксированных на цитоплазматической мембране тромбоцита, являются гликопротеинами (табл. 3.1).
| Мембранные рецепторы | Агонисты (лиганды) | Число рецепторов на 1 тромбоците | |
|---|---|---|---|
| Рецепторы для высокомолекулярных белков | GPIb-V-IX | Фактор Виллебранда, тромбин | 50 000 |
| GPIIb-IIIa | Фибриноген, фактор Виллебранда, фибрин, фибронектин, витронектин, тромбоспондин | 50 000 | |
| GPIc-IIa | Фибронектин, ламинин | 1000 | |
| VN-R | Витронектин, тромбоспондин | 100 | |
| GPIa-IIa | Коллаген | 1000 | |
| GPIIIb | Тромбоспондин | ||
| GPVI | Коллаген | ||
| Рецепторы для физиологических стимуляторов | P2-R | Аденозиндифосфат | Выс. афф. 600; низ. афф. 60 000 |
| A-adr-R | Адреналин | 300 | |
| 5-HT-R | Серотонин | 50 | |
| HR 1 | Гистамин | ||
| V-R | Вазопрессин | ||
| Thr-R (STDR) | Тромбин | 1700–2000 | |
| TP-R | Тромбоксан | 1000–1700 |
Один конец молекулы рецепторных гликопротеинов находится во внеклеточном пространстве, а другой «пронизывает» мембрану и контактирует со структурами тромбоцита, расположенными на внутренней стороне цитоплазматической мембраны. На наружных частях гликопротеиновых молекул располагаются рецепторные локусы, специфичные для разных веществ (лигандов). После соединения рецепторных локусов с лигандами создается сигнал активации, передающийся к внутренним частям тромбоцитов.
Лиганды — вещества, которые могут специфически взаимодействовать с рецептором, вызывать его конформационные изменения и таким образом модулировать функциональную активность тромбоцита. Каждый рецептор имеет один или несколько физиологических агонистов и может связывать их с высокой или с низкой аффинностью (рис. 3.1).
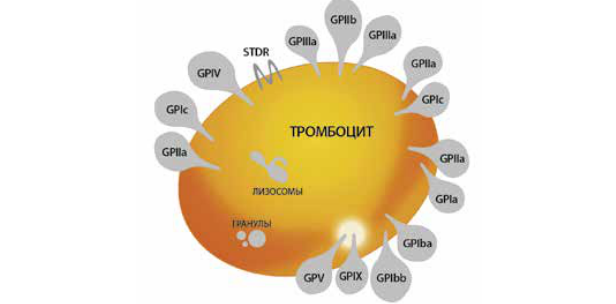
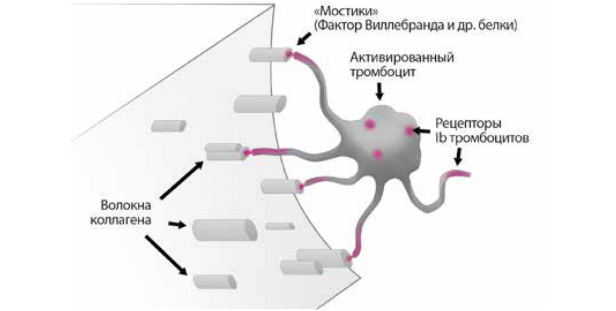
Непосредственно адгезия тромбоцитов к субэндотелиальным волокнам коллагена происходит благодаря наличию на тромбоцитах рецептора к коллагену — гликопротеида Ia-IIa, относящегося к семейству интегринов. А стабилизация образовавшегося соединения устанавливается фактором фон Виллебранда, который образует связь между субэндотелиальными волокнами коллагена и рецептором тромбоцита — гликопротеидом Ib-IX (рис. 3.2).
3.3. Третья стадия: активация и дегрануляция тромбоцитов
Как уже было указано выше, активация тромбоцитов происходит посредством субэндотелиальных структур стенки сосуда (коллагеном и микрофибриллами) за счет адгезии, что приводит к изменению дисковидной формы тромбоцитов на сферическую и к образованию у них отростков (псевдоподий тромбоцитов). Коллаген-индуцированная агрегация тромбоцитов имеет достаточно выраженную латентную фазу и может составлять 5–7 мин. Реакцией высвобождения называется избирательное выделение из агрегированных тромбоцитов определенных соединений, находящихся в гранулах, с сохранением целостности клетки. Характерно, что секреция содержимого гранул в плазму не сопровождается лизисом клетки, при котором разрушаются мембраны, и органеллы вместе со своим содержимым выходят в окружающую среду. При реакции высвобождения гранулы выбрасывают свое содержимое посредством сокращения микротубулярной системы, связанной с поверхностью клетки, при этом тромбоциты сохраняют целостность или во всяком случае способность к выполнению своих функций (рис. 3.3).
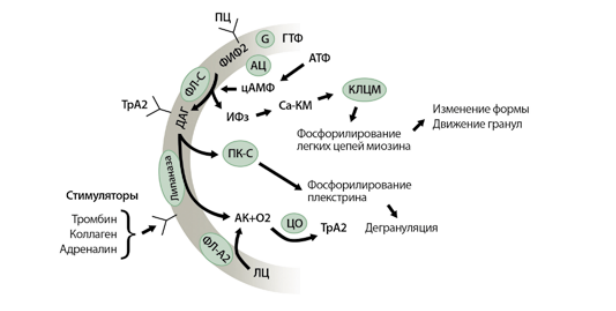
Условно реакцию высвобождения разделяют на несколько стадий: 1) индукцию — влияние на мембрану различных соединений (коллагена, тромбина и других факторов), стимулирующих ее и приводящих к освобождению из нее Са2+; 2) трансмиссию — проникновение Са2+ в клетку. В последние годы установлено, что Са2+ играет ключевую роль в функцио нальной активности тромбоцитов. Существует ряд доказательств в пользу этого положения, прежде всего — аналогия с другими клетками, в отношении которых известно, что Са2+ является возбудителем секреции и сокращения. К непрямым доказательствам относится известный факт, что адгезия и секретирование содержимого гранул тромбоцитов индуцируются катионным ионо-
фором А23187, причем ответ на действие этого соединения такой же, как и при действии других стимулов. И наконец, к прямым доказательствам можно отнести блокирование лекарственными средствами (некоторыми локальными анестетиками) функциональной активности кровяных пластинок наряду с ингибированием высвобождения Са2+ из саркоплазматического ретикулума. Несмотря на то что на экспериментальном уровне окончательно это не доказано, существуют предположения о том, что в регуляции функций тромбоцитов основную роль играют внутриклеточные ресурсы Са2+. При увеличении концентрации Са2+ в цитоплазме высвобождается Са2+ из мембраны, что приводит к быстрому изменению формы тромбоцитов, затем везикулярные органеллы выделяют Са2+ в цитоплазму и индуцируют реакцию высвобождения, при этом происходят секреция Са2+ в окружающую среду и изменения в плазматической мембране, которые выражаются в увеличении проницаемости для Са2+. При высвобождении Са2+ из плотных гранул мембрана этих органелл соединяется с плазматической мембраной или с мембраной канальцевой системы, связанной с поверхностью клетки, которая, сокращаясь, выталкивает Са2+ и некоторые другие соединения в цитоплазму. В связи с тем что регуляция уровня Са2+ обеспечивает контрактильное состояние клетки, активность сократительного механизма, необходимого для агрегации, реакции высвобождения, ретракции кровяного сгустка, было проведено значительное количество исследований с целью выявления рецепторов для Са2+ в тромбоцитах. К весьма существенным результатам этих исследований следует отнести выделение из лизатов тромбоцитов четырех белков (меченных-32Р-АТР), связывающих Са2+ (молекулярная масса 50 000, 28 000, 15 000 и 11 000 дальтон). Наибольшее включение метки обнаружено во фракции белка с молекулярной массой 11 000 дальтон, причем только этот белок из четырех рецепторов метился 32Р в неповрежденных тромбоцитах. Он локализован на поверхности клетки и связывает 1 моль Са2+ на 1 моль фосфорилированного белка. Результатом активации является высвобождение ряда веществ, служащих сильными стимуляторами тромбоцитов (аденозиндифосфат, серотонин, адреналин, нестабильные простагландины, тромбоксан А2, тромбоцит-активирующий фактор). Адреналин, коллаген и тромбин, связываясь с мембранными рецепторами, активируют два мембранных фермента — фосфолипазу С и фосфолипазу A2. Эти ферменты катализируют расщепление двух мембранных фосфолипидов, фосфатидилинозитол-4,5-дифосфата и лецитина, с образованием арахидоновой кислоты. Сначала небольшое количество арахидоновой кислоты превращается в тромбоксан A2, который, в свою очередь, активирует фосфолипазу С. Образование тромбоксана A2 из арахидоновой кислоты катализируется циклооксигеназой. При гидролизе фосфатидилинозитол-4,5-дифосфата образуются диацилглицерин и инозитол-1,4,5-трисфосфат. Инозитол-1,4,5-трисфосфат вызывает выброс кальция в цитоплазму, что запускает фосфорилирование легких цепей миозина. Взаимодействие миозина с актином обеспечивает перемещение гранул и изменение формы тромбоцита. Диацилглицерин активирует протеинкиназу С, которая фосфорилирует ряд белков, в том числе киназу легких цепей миозина и плекстрин (белок мас-
сой 47 000). Предполагается, что фосфорилирование этих или других белков также регулирует дегрануляцию тромбоцитов. Тромбоксан A2, образующийся из арахидоновой кислоты в тромбоцитах, стимулирует их активацию, а простациклин (простагландин I2), образующийся из той же кислоты в эндотелии, подавляет активацию тромбоцитов (за счет повышения уровня циклического аденозинмонофосфата). Заключительной фазой реакции высвобождения является секреция, которая протекает в два этапа: выход содержимого из плотных телец (главным образом серотонина, аденозиндифосфата, Са2+) и секреция из α-гранул тромбоцитов факторов роста, способных запускать процессы регенерации, а также аденозинтрифосфата, фактора 4, способного присоединять и нейтрализовать гепарин, фактора III, катализирующего конечную стадию свертывания — образование фибрина, а также секреция Са2+, липидов и некоторых гидролаз в следовых количествах. Ферменты, находящиеся в цитоплазме, митохондриях и мембране, клеткой удерживаются. Поэтому становится очевидным тот факт, что при введении аутологичной плазмы в определенную зону происходят те же процессы адгезии тромбоцитов и высвобождение соответствующих факторов роста из альфа-гранул, что и в норме.
3.4. Факторы роста и механизм их влияния на ткани
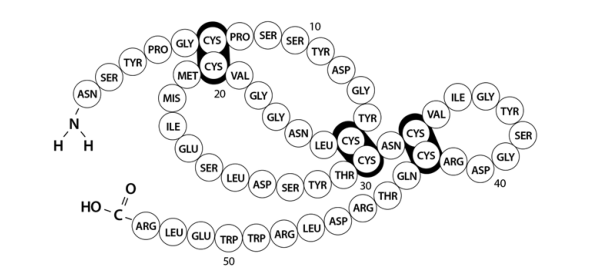
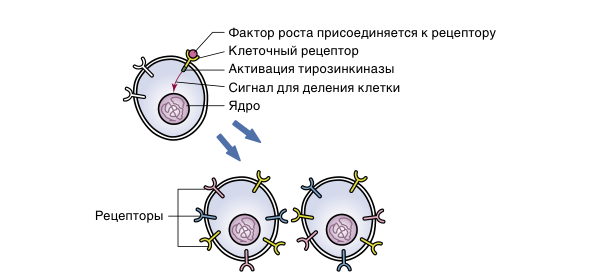
Факторы роста представляют собой белковые молекулы с определенным набором аминокислот. Основные факторы роста, содержащиеся в тромбоцитах, и их функции описаны в табл. 3.2. Эпидермальный фактор роста — белковое соединение, полипептид с молекулярной массой 6000, молекула которого состоит из 53 аминокислотных остатков; был впервые выделен из слюнных желез мыши (рис. 3.4). В 1962 г. во время лабораторного эксперимента американский биохимик Стэнли Коэн (Соhеn) случайно открыл фактор роста эпидермиса. Он представляет собой полипептид с небольшой молекулярной массой, который присутствует во многих тканях организма. Впоследствии он был найден во многих тканях организма. Доказанные и гипотетические функции эпидермального фактора роста можно классифицировать как эндокринные и паракринные. Эпидермальный фактор роста содержится в крови, моче, цереброспинальной жидкости, молоке, слюне, желудочном и панкреатическом соке. Рецептор фактора эпидермального роста относится к семейству рецепторов тирозинкиназ, в которое также входят HER2/erbB2 и HER3/erbB3. Все они являются привлекательными мишенями для стратегий лечения раковых заболеваний. Рецептор фактора эпидермального роста — это сложная белковая молекула, которая закодирована в одном из генов. Механизм действия следующий: фактор присоединяется к специфическим внеклеточным рецепторам, две внеклеточные части соединяются, активируется тирозинкиназа, сигнальные молекулы взаимодействуют с тирозинкиназой и возникает сигнал к делению клетки (рис. 3.5). Именно он подавляет работу гена, отвечающего за старение, стимулируя активность и рост клеток кожи. Он индуцирует образование молодых клеток кожи за счет ускорения процесса регенерации, в результате чего происходит
| Белок | Функция |
|---|---|
| Инсулиноподобный фактор роста | Стимулирует дифференцирование стволовых клеток, усиливает метаболизм костной ткани и синтез коллагена |
| PDGF | Содержит сигнальные пептиды. Продуцируется тромбоцитами и макрофагами. Трансформирует клетки, имеющие соответствующие рецепторы. Активирует пролиферацию и миграцию мезенхимальных (остеогенных) клеток. Стимулирует ангиогенез |
| Эпидермальный фактор роста | Стимулирует пролиферацию фибро- и остеобластов. Стимулирует синтез фибронектина |
| Фактор роста фибробластов | Продуцируется эндотелиальными клетками, макрофагами, остеобластами и тромбоцитами. Вызывает экспрессию в костной ткани, ангиогенез, оссификацию. Индуцирует продукцию TGF в остеобластных клетках |
| TGF-β («семейство» TGF) | Продуцируются тромбоцитами и остеобластами. В большом количестве содержатся в тромбоцитах. Содержат сигнальный пептид и 16 доменов, обладающих кальций-связывающими сайтами. Многофункциональные факторы, т.к. не только индуцируют дифференцирование мезенхимальных клеток, но и вызывают множество клеточных и межклеточных ответов, включая выработку других факторов роста. К TGF относятся костные морфогенетические белки, часть которых (костный морфогенетический белок-2, остеогенин или костные морфогенетические белки-3, -4, -5, -7, -8 и -9) являются выраженными остеоиндукторами |
| PDGF эндотелиальных клеток | Фермент, поддерживающий целостность кровеносных сосудов. Оказывает стимулирующее действие на эндотелиальные клетки и обладает ангиогенным эффектом. Имеет ген на 22-й хромосоме |
| VEGF, или ростовой фактор эндотелия сосудов | Имеются 4 вида фактора VEGF-A, -B, -C и -D. Участвуют в ангиогенезе, индуцируют пролиферацию эндотелиальных клеток сосудов. Являются гепаринсвязывающими белками |
| Плацентарные ростовые факторы-1/-2 | Потенцируют действие VEGF, повышают проницаемость сосудистой стенки |
| Тромбоспондин | Имеет 3 гена на 1-й, 6-й и 15-й хромосомах. Содержится в тромбоцитах, базальной мембране кровеносных сосудов. Синтезируется остеобластами и находится в остеоиде. Опосредует адгезию костных клеток |
| Остеонектин, «культуральный шоковый протеин» | Составляет 15% органического компонента костного матрикса. Ген локализуется на 5-й хромосоме. Содержится в остеобластах, одонтобластах, хондроцитах и тромбоцитах. Регулирует пролиферацию и взаимодействие клеток с матриксом. Биохимически связывается с β-цепью PDGF |
значительное сокращение глубины морщин, исчезают пигментные пятна, кожа приобретает молодой и свежий вид. Он помогает бороться с возрастными изменениями:
● ●способствует удалению ороговевших клеток и разглаживанию морщин, делает кожу гладкой, упругой и нежной, оказывает омолаживающее воздействие на кожу; ● ●защищает кожу от повреждений и раздражений;
● ●усиливает действие гена BCL-2, задерживающего старение клеток, обладает ранозаживляющей способностью, уменьшает вредное воздействие ультрафиолетового излучения, низких температур, негативных последствий приема лекарств; ● ●устраняет ощущения сухости, стянутости, снимает раздражение, повышает способность эпидермиса удерживать влагу; ● ●улучшает цвет кожи;
● ●способствует метаболизму клеток, препятствует процессу пигментации, предупреждает образование темных пятен после приема солнечных процедур; ● ●усиливает и улучшает кровообращение эпидермиса, делает цвет кожи естественным и здоровым; ● ●кроме того, он является источником здоровья и красоты кожи, так как глубоко увлажняет ее и улучшает синтез макромолекулярных белков, обеспечивающих ее эластичность. Обычно хронически воспаленные ткани характеризуются нарушением процесса ангиогенеза, обусловленным недостаточной выработкой факторов роста сосудов, либо увеличенной секрецией ингибиторов ангиогенеза (тромбоспондина, матриксных металлопротеаз и активаторов плазминогена, эндостатина и др.). Процесс ангиогенеза строго регулируется факторами роста во времени и пространстве. Основным стимулом к ангиогенезу при физиологических и патологических состояниях является недостаток кислорода (гипоксия или ишемия), который через активатор транскрипции факторов ангиогенеза — индуцируемый гипоксией фактор-1 вызывает экспрессию многих ангиогенных факторов и прежде всего основного регулятора ангиогенеза — VEGF и его рецепторов. VEGF избирательно стимулирует пролиферацию и миграцию эндотелиальных клеток, их предшественников и моноцитов, экспрессирующих рецепторы к нему, увеличивает сосудистую проницаемость, способствуя пропотеванию белков плазмы в околососудистое пространство, необходимое для миграции эндотелиальных клеток, индуцирует экспрессию эндотелиальной NO-синтазы и образование NO, что способствует вазодилатации и стимулирует экспрессию протеаз, разрушающих связи между эндотелиальными клетками и внеклеточным матриксом, необходимую для направленной миграции клеток. В процессе стабилизации и «взросления» вновь образованной незрелой сосудистой сети участвуют: 1) ангиопоэтин-1, подавляющий пролиферацию эндотелиальных клеток, уменьшающий сосудистую проницаемость и способствующий привлечению перицитов; 2) PDGF, привлекающий перициты и гладкомышечные клетки; 3) TGF-b 1, стимулирующий синтез белков матрикса. Факторы роста фибробластов составляют семейство, в которое входят около 20 гомологичных полипептидных факторов со сходными свойствами. Наиболее изучен основной фактор роста (фактор роста фибробластов-2, 18 кД). Фактор роста фибробластов стимулирует пролиферацию и дифференцировку стромальных клеток мезодермального происхождения — фибробластов, остеобластов, хондробластов, миелобластов, эндотелиальных клеток.
3.5. Ингибиторы пролиферации и их влияние на клетки тканей
Размножение клеток в нужных масштабах определяется не только стимуляторами, но и ингибиторами пролиферации. К последним относятся кейлоны. Механизм действия этих веществ хорошо изучен на примере эпителия. Эти вещества синтезируются и депонируются в зрелых клетках, слущивающихся с кожи. Когда число этих клеток уменьшается, становится меньше и число кей-
лонов, а значит, снижается эффект торможения, и деление клеток ускоряется. Воспалительный очаг характеризуется наличием малого числа зрелых клеток и, следовательно, низким содержанием кейлонов — депрессоров деления. Один из механизмов торможения процессов пролиферации заложен в самих альфа-гранулах тромбоцитов и осуществляется за счет альфа-2макроглобулина. Этот белок имеет широкий спектр действия, он является главным ингибитором кининообразующих ферментов крови, устраняющим их влияние — расширение и повышение проницаемости сосудов. Кроме того, он ингибирует большинство протеиназ из лейкоцитов, в том числе коллагеназу и эластазу, и тем самым предохраняет от разрушения элементы соединительной ткани. Наконец, макроглобулин может связываться с мембранами нейтрофилов и таким образом тормозить их реакцию на С3 и С5а (хемотаксис). Следовательно, при введении аутологичной плазмы в зону травмы и воспаления концентрация тромбоцитов на этом участке повышается в несколько сотен раз по сравнению с естественной, что позволяет разорвать образовавшийся порочный круг хронического воспаления за счет искусственной стимуляции тканей к хемотаксису, пролиферации и дифференцировке клеток, а значит, к инициированию процессов регенерации.
Справочная литература
1. Ахмеров Р.Р., Зарудий Р.Ф., Рычкова И.Н., Исаева М.Г., Алтыева А.Ф. Аутостимуляция регенеративных процессов в челюстно-лицевой хирургии и косметологии // Сборник тезисов X международного симпозиума по эстетической медицине. М., 2011. С. 16.
2. Ахмеров Р.Р., Зарудий Р.Ф., Бочкова (Короткова) О.И., Рычкова И.Н. Аутостимуляция дермы при повышенном выпадении волос и алопеции // Экспериментальная и клиническая дерматокосметология. 2011. № 4. С. 36–40.
3. Ахмеров Р.Р., Зарудий Р.Ф., Бочкова (Короткова) О.И., Рычкова И.Н. Плазмолифтинг (Plasmolifting) — лечение возрастной атрофии кожи богатой тромбоцитами аутоплазмой // Эстетическая медицина. 2011. Т. X. № 2. С. 181–187.
4. Биохимия мембран: учеб. пособие для биол. и мед. спец. вузов / под ред. А.А. Болдырева. М.: Высшая школа, 1986. Кн. 7: Кальций и биологические мембраны / Д.О. Левицкий. 1990. 124 с.
5. Биохимия человека: в 2 т. / Р. Марри, Д. Герннер, П. Мейес, В. Родуэлл; пер. с англ. М.Д. Гроздовой и др.; под ред. Л.М. Гинодмана, В.И. Кандрора. М.: 1993. Т. 2. 414 с.
6. Бозо И.Я., Деев Р.В., Пинаев Г.П. Фибробласт-специализированная клетка или функциональное состояние клеток мезенхимного происхождения? // Цитология. 2010. Т. 52, № 2. С. 99–108.
7. Воробьева B.В., Меркушенкова Д.А., Эстрин Л.Г. Роль фактора роста эндотелия сосудов в развитии диабетической ретинопатии и диабетического макулярного отека у больных сахарным диабетом 2 типа // Вопросы биологической, медицинской и фармацевтической химии. 2012. № 3. С. 48–54.
8. Грештейн Е.С., Грицаенко Е.В., Щербаков М.Е. и др. Факторы роста эндотелия сосудов и компоненты системы активации плазминогена при раке и гиперплазии эндометрия // Вопросы онкологии: Научно-практический журнал. 2003. Т. 49, № 6. С. 725–729.
9. Герштейн Е.С., Кушлинский Н.Е. Взаимосвязь экспрессии компонентов VEGF — cигнального пути и матриксных металлопротеиназ в опухолях больных с новообразованиями яичников // Бюллетень экспериментальной биологии и медицины. 2011. Т. 151, № 4. С. 431–435.
10. Герштейн Е.С., Кушлинский Н.Е. Современные представления о механизмах передачи сигналов факторов роста как основа эффективной молекулярной направленной противоопухолевой терапии // Вопросы биологической медицинской и фармацевтической химии. 2007. № 1. С. 4–9.
11. Грештейн Е.С., Щербаков А.М., Казьмин А.И. Активаторы плазминогенаурокиназного и тканевого типов и их нигибиторов РАI-1 при раке желудка // Вопросы онкологии: Научно-практический журнал. 2003. Т. 49, № 2. С. 165–169.
12. Гистология (введение в патологию): учебник / под ред. Э.Г. Улумбекова, Ю.А. Челышева. М.: ГЭОТАР-Медицина, 1998. 949 с.
13. Гусев Е.Ю., Черешнев В.А. Системное воспаление: теоретические и методологические подходы к описанию модели общепатологического процесса. Ч. 1.Общая характеристика процесса // Патологическая физиология и экспериментальная терапия. 2012. № 4. С. 3–14.
14. Данилов Р.К. Общие принципы клеточной организации, развития и классификации тканей / Руководство по гистологии. Т. 1. СПб.: СпецЛит, 2011. 495 с.
15. Ахмеров Р.Р., Зарудий Р.Ф. Применение обогащенной тромбоцитами аутоплазмы для лечения фотодерматоза // Электронный журнал «Регенеративная хирургия». 2005. № 3.
16. Иванов В.П. Полиморфизм Arg25Pro гена трансформирующего фактора роста-бета 1 и его роль в патогенезе гипертонической болезни в русской популяции Центрально-черноземного региона России // Бюллетень экспериментальной биологии и медицины. 2007. Т. 144, № 7. С. 72–74.
17. Клишов А.А. Гистогенез и регенерация тканей. Л.: Медицина, 1984. 232 с.
18. Кушлинский Д.Н. Факторы роста эндотелии сосудов и его рецепторы 1-го и 2-го типа в сыворотке крови больных новообразованиями яичника // Вопросы биологической, медицнской и фармацевтической химии. 2012. № 10. С. 30–35.
19. Махмутова А.Ф. Эффективность комплексного восстановительного лечения больных воспалительными заболеваниями пародонта: автореф. дис. ... канд. мед. наук. М., 2009. 16 с. 20. Миндукшев И.В., Рукояткина Н.И., Добрылко И.А., Скверчинская Е.А., Никитина Е.Р., Кривошлык В.В., Гамбарян С.П., Кривченко А.И. Особенности апоптоза безъядерных клеток: тромбоцитов и эритроцитов человека // Российский физиологический журнал им. И.М. Сеченова. Т. 99, № 1, 2013. С. 92–110. 21. Омельяненко Н.П., Слуцкий Л.И. Соединительная ткань (гистофизиология и биохимия). М.: Известия, 2009. 380 с.
22. Патент 2494788. Медицинский гель для сепарации эритроцитов и лейкоцитов / Д.Ю. Лавров. № 2012133975; заяв. 07.08.13; зарегистрирован 10.10.13. 23. Патологическая физиология: учеб для мед вузов / под ред. А.Д. Адо, В.И. Пыцкого [и др.]. М.: Триада-Х, 2001. 574 с.
24. Патологическая физиология: учебник для студ. мед. вузов / под. Ред. Н.Н. Зайко, Ю.В. Быця. 3-е изд, М.: МЕДпресс-Информ, 2008. 635 с. 25. Патофизиология: учебник для мед. вузов: в 2 т. / П.Ф. Литвицкий. 3-е изд., испр. и доп. М.: ГЭОТАР-Медиа, 2006. Т. 1. 2006. 751 с., Т. 2. 807 с.
26. Повещенко А.Ф. Механизмы и факторы ангиогенеза [электронный ресурс] / А.Ф. Повещенко, В.И.Коненков; НИИ клинической и экспериментальной лимфологии СО РАМН (Новосибирск) // Успехи физиологических наук. 2010. Т. 41, № 2. С. 68–89.
27. Разрешение на применение новой медицинской технологии от 26.10.2010 ФС № 2010/380 «Аутостимуляция регенеративных процессов при лечении пародонтита и атрофических состояний мягких тканей средней зоны лица». 28. Сабурова О.С., Творогова М.Г., Соболева Э.Л. Колониестимулирующий фактор гранулоцитов-макрофагов и фактор роста фибробластов в крови пациентов с гиперлипопротеидемией // Бюллетень эксперименталдьной биорлогиии медицины. 2003. C. 170–172.
29. Серов В.В., Шехтер А.Б. Соединительная ткань (функциональная морфология и общая патология). М.: Медицина, 1981. 312 с.
30. Хабибьянов Р.Я.,Ахмеров Ф.Р. Аутостимуляция регенеративных процессов при лечении артрозов крупных суставов нижних конечностей богатой тромбоцитами аутоплазмой. Казань, 2012.
31. Чернух А.М. Воспаление (очерки патологии и экспериментальной терапии). М.: Медицина. 1979.
32. Abe R., Donnelly S.C., Peng T., Bucala R., Metz C.N. Peripheral blood fibrocytes: differentiation pathway and migration to wound sites // J. Immunol. 2001. No. 166. Р. 7556– 7562. 33. Anitua E. Plasma rich in growth factors: Preliminary results of use in the preparation of future sites for implants // Int. J. Oral Maxillofac. Implants. 1999. No. 14. Р. 529–535. 34. Boxman I., Lowik C., Aarden L., Ponec M. Modulation of IL-6 production and IL-1 activity by keratinocyte-fibroblast interaction // J. Invest. Dermatol. 1993. No. 101. Р. 316–324.
35. Bucala R., Spiegel L.A., Chesney J., Hogan M., Cerami A. Circulating fibrocytes define a new leukocyte subpopulating that mediates tissue repair // Mol.Med. 1994. No. 1. Р. 71–81.
36. Chesney J., Bucala R. Peripheral blood fibrocytes: novel fibroblast-like cells that present antigen and mediate tissue repair // Biochem. Soc. Trans. 1997. No. 25. Р. 520–524. 37. Chesney J., Metz C., Stavitsky A., Bacher M., Bucala R. Regulated production of type 1 collagen and inflammatory cytokines by peripheral blood fibrocytes // J. Immunol. 1998. No. 160. Р. 419–425.
38. Davis J.C., Buckley C.J., Per-Olof B. Compromised soft tissue wounds: Correction of wound hypoxia // T.K. Hunt (ed.). Problem Wounds: The Role of Oxygen. New York: Elsevier, 1988. Р. 143–152.
39. Froum S.J., Wallace S.S., Tarnow D.P., Cho S.C. Effects of platelet-reach plasma on bone growth and osseintegration in human maxillary sinus grafts: Three bilateral case reports // Int. J. Periodontics Restorative Dent. 2002. No. 22. Р. 45–53.
40. Gambaryan S., Geiger J., Schwarz U.R., Butt E., Begonja A., Obergfell A., Walter U. Potent inhibition of human platelets by cGMP analogs independent of cGMP-dependent protein kinase // Blood. 2004. № 103. Р. 2593–2600.
41. Greenlagh D.G. The role of growth factors in wound healing // J. Trauma. 1996. No. 41. Р. 159–167. 42. Haynesworth S.E., Goshima О., Goldberg V.M., Caplan A.I. Characterization of cells with osteogenic potential from human marrow // Bone. 1992. Vol. 13, No. 1. Р. 81–84.
43. Johnson K., Hunt T.K., Mathes S.J. Oxygen as an isolated variable influences resistance to infection // Ann. Surg. 1988. No. 208. Р. 783–787.
44. Kile B.T. The role of the intrinsic apoptosis pathway in platelet life and death // J.Thromb. Haemost. 7. 2009. No. 1. Р. 214–217.
45. Knighton D., Silver I., Hunt T.K. Regulation of wound healing angiogenesis — Effect of oxygen gradients and inspired oxygen concentration // Surgery. 1981. No. 90. Р. 262–270.
46. Kodama T., Takehara T., Hikita H., Shimizu S., Shigekawa M., LiW., Miyagi T., Hosui A., Tatsumi T., Ishida H., Kanto T., Hiramatsu N., Yin X.M., Hayashi N. BH3-only activator proteins Bid and Bim are dispensable for Bak/Bax-dependent thrombocyte apoptosis induced byBcl-xL deficiency: molecular requisites for the mitochondrial pathway to apoptosis in platelets // J.Biol.Chem. 2011. Vol. 286, No. 16. Р. 13 905–13 913. 47. Lindbom L. Regulation of vascular permeability by neutrophils in acute inflammation // Chem. Immunol. Allergy. 2003. No. 83. P. 146–166.
48. Levi M., van der Poll T. Inflammation and coagulation // Crit.Care Med. 2010. No. 38. P. 26–34.
49. Leytin V., Allen D.J., Lyubimov E., Freedman J. Higher thrombin concentrations are required to induce platelet apoptosis than to induce platelet activation // Br. J. Haematol. 2007. No. 136. Р. 762–764.
50. Marx R.E. Radiation injury to tissue // E.R. Kindwall (ed.). Hyperbaric Medicine Practice. Flagstaff, AZ: Best Publishing Company, 1994. Р. 447–504.
51. Mohan S., Baylink D.J. Bone growth factors // Clin. Orthop. Relat. Res. 1991. No. 263. Р. 30–43.
52. Strukova S. Blood coagulation-dependent inflammation. Coagulation-dependent inflammation and inflammation-dependent thrombosis // Frontiers in bioscience. 2006. No. 11. P. 59–80.
53. Webster N.R. Inflammation and the coagulation system // Br. J. Anaesth. 2002. Vol. 89, No. 2. Р. 216–220.
54. Wergedal J.E., Mohan S., Lundy M., Baylink D.J. Skeletal growth factor and other factors known to be present in bone matrix stimulate proliferation and protein synthesis in human bone cells // J. Bone Miner Res. 1990. N 5. Р. 179–186.
Продолжение следует.